
Mirar parece una acción inmediata. Abrimos los ojos, distinguimos un rostro conocido, seguimos el trayecto de un objeto en movimiento o encontramos una palabra dentro de una página. Sin embargo, detrás de cada una de estas actividades existe una cadena de procesos ópticos, celulares y neuronales que transforma la luz del ambiente en una experiencia consciente.
La visión no es una fotografía que viaja intacta desde el exterior hasta el cerebro. La córnea y el cristalino enfocan la luz sobre la retina; los fotorreceptores convierten los fotones en señales eléctricas; los circuitos retinianos separan información relacionada con contraste, color y movimiento; y distintas vías nerviosas distribuyen estos datos hacia estructuras cerebrales encargadas de analizarlos, compararlos con experiencias previas y utilizarlos para orientar nuestra conducta.
Comprender este proceso permite reconocer algo importante: ver no depende únicamente de que el globo ocular tenga una anatomía aparentemente normal. También requiere el funcionamiento coordinado de una red que incluye retina, nervio óptico, tálamo, mesencéfalo, hipotálamo, corteza occipital y diversas regiones asociadas con memoria, atención y acción.
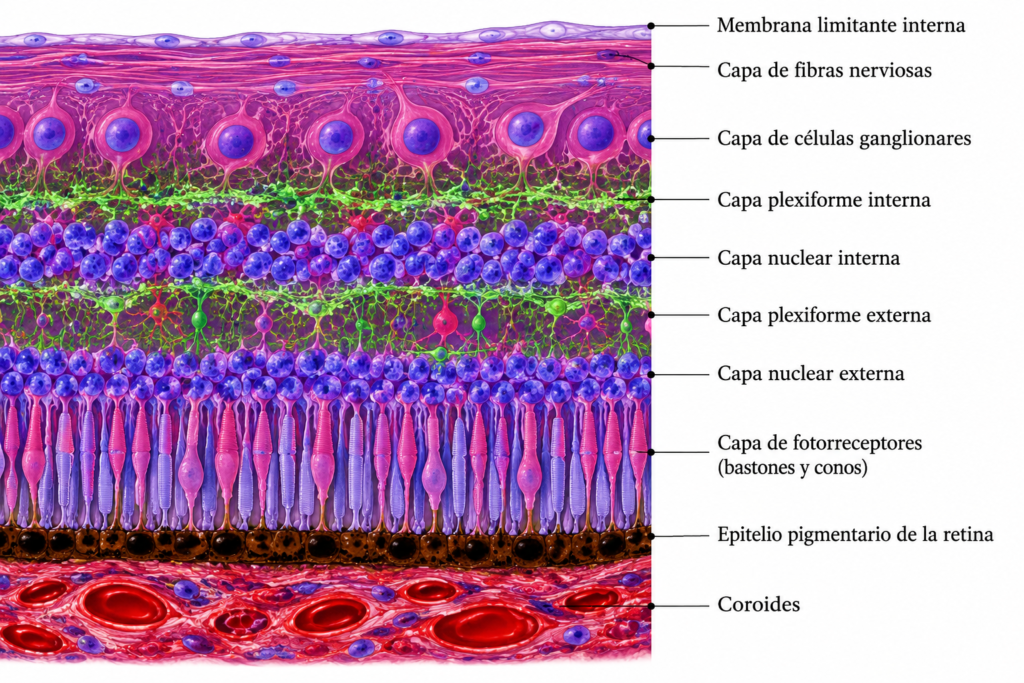
Imagen. Esquema de las capas y composición celular de la retina
La recepción de la luz
Todo comienza cuando la luz reflejada por los objetos del entorno atraviesa las estructuras transparentes del ojo. La córnea aporta gran parte del poder refractivo necesario para desviar los rayos luminosos. Posteriormente, el cristalino modifica su curvatura para ajustar el enfoque según la distancia a la que se encuentre el objeto observado.
Cuando miramos a lo lejos, el músculo ciliar se relaja y el cristalino adopta una forma más aplanada. En cambio, durante la visión cercana, el músculo se contrae, disminuye la tensión ejercida por las fibras zonulares y el cristalino se vuelve más convexo. Este fenómeno se denomina acomodación y se coordina con la convergencia de ambos ojos y con la contracción pupilar, formando parte del llamado reflejo de cerca.
La pupila también cumple una función más compleja que la de permitir el paso de luz. Al contraerse, disminuye ciertas aberraciones ópticas y aumenta la profundidad de campo, aunque al mismo tiempo reduce el número de fotones que alcanzan la retina. De esta manera, desde las primeras etapas de la visión ya existe un equilibrio entre sensibilidad luminosa y precisión de la imagen.
La retina: mucho más que una pantalla
En el fondo del ojo se encuentra la retina, un tejido nervioso especializado que recibe la imagen formada por el sistema óptico. Aunque suele imaginarse como una superficie pasiva sobre la que se proyecta el mundo exterior, en realidad funciona como una red de procesamiento altamente organizada. Antes de que la información alcance el cerebro, la retina ya ha comenzado a separar y analizar características relevantes de la escena visual.
Entre sus células más importantes se encuentran los fotorreceptores: los bastones y los conos. Los bastones son extraordinariamente sensibles y permiten la visión escotópica, es decir, la visión en condiciones de poca luz. Incluso pueden responder a la absorción de fotones individuales. Sin embargo, ofrecen menor resolución espacial y no permiten apreciar los colores.
Los conos, por otra parte, funcionan mejor cuando existe buena iluminación. Participan en la visión fotópica, aportan alta resolución espacial y temporal y permiten distinguir colores. Existen tres clases principales, denominadas L, M y S, cuyas sensibilidades espectrales son diferentes. A partir de la comparación entre sus señales, el sistema visual puede construir la experiencia del color.
La distribución de estos fotorreceptores también explica varias capacidades de nuestra visión cotidiana. La fóvea central contiene una gran densidad de conos y presenta una mínima convergencia entre células, por lo que permite reconocer detalles finos. Por ello dirigimos la mirada hacia aquello que deseamos leer o identificar. En la periferia retinal, en cambio, múltiples fotorreceptores convergen sobre neuronas de salida; esto reduce la precisión, pero aumenta la sensibilidad para detectar movimiento, cambios de luminosidad y eventos que ocurren fuera del punto de fijación.
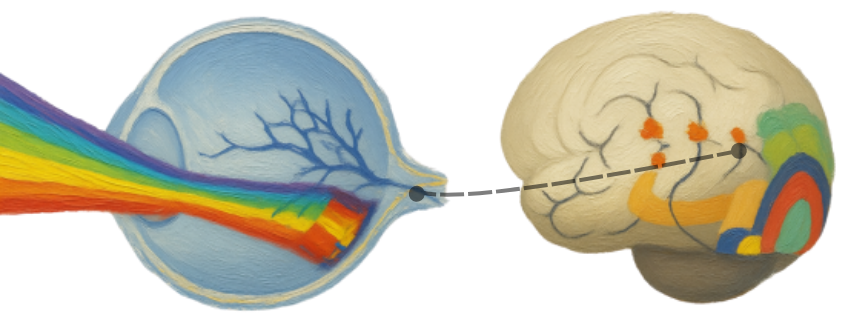
Imagen. Representación del trayecto de la luz y como la misma es captada por la retina y la vía que transforma el estímulo lumínico a nervioso donde será interpretada por los núlceos visuales en el lóbulo occipital
De los fotones a las señales neuronales
El proceso por el cual la energía luminosa se transforma en una señal eléctrica se denomina fototransducción. En los fotorreceptores, un pigmento visual formado por una opsina unida al 11-cis-retinal absorbe la luz. Este cromóforo, derivado de la vitamina A, cambia su configuración tras captar un fotón y desencadena una cascada molecular que modifica el estado eléctrico de la célula.
En los bastones, la rodopsina activada estimula a la proteína G transducina, la cual activa a la fosfodiesterasa PDE6. Como consecuencia, disminuye la concentración de GMP cíclico. En la oscuridad, dicho compuesto mantiene abiertos canales catiónicos que permiten la entrada de sodio y calcio; por esta razón, el fotorreceptor permanece relativamente despolarizado y libera glutamato de manera continua.
Cuando llega la luz, los canales se cierran, disminuye la entrada de iones, la membrana se hiperpolariza y se reduce la liberación de glutamato. Este comportamiento parece
contrario al de muchos receptores sensoriales: en lugar de activarse por despolarización, el fotorreceptor responde a la luz mediante hiperpolarización. Además, no transmite la información mediante potenciales de acción convencionales, sino mediante cambios graduados en su potencial de membrana y en la liberación de neurotransmisor.
Para seguir funcionando bajo distintas condiciones de iluminación, el sistema debe recuperar el pigmento visual y ajustar su sensibilidad. El all-trans-retinal se separa de la opsina y es transportado al epitelio pigmentario de la retina, donde participa en el ciclo visual que permite regenerar 11-cis-retinal. La proteína RPE65 interviene en este proceso de isomerización, indispensable para recuperar pigmentos visuales funcionales.
La adaptación no ocurre solamente en los fotorreceptores. Las células horizontales, bipolares y ganglionares modifican la ganancia de sus circuitos según el nivel de iluminación de fondo. Gracias a ello, la salida retinal informa principalmente sobre contrastes y cambios respecto al contexto, no simplemente sobre la cantidad absoluta de luz que llega al ojo.
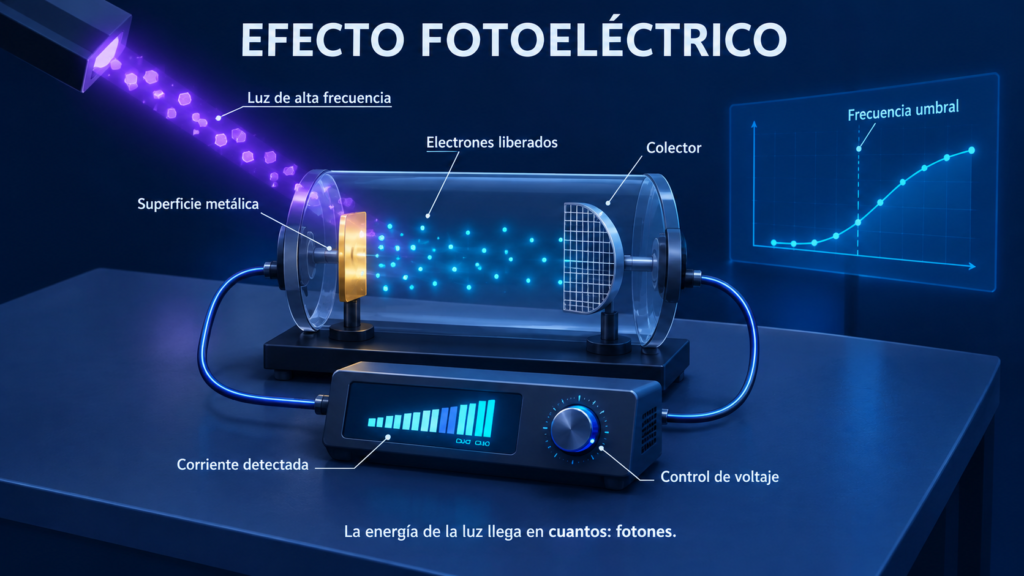
Imagen. Esquemas del experimento que demuestra el fenómeno fotoeléctrico
Contraste, color y movimiento
Una de las formas más importantes de organización retinal consiste en separar los incrementos y decrementos de luz. Las células bipolares ON se despolarizan cuando aumenta la iluminación, mientras que las bipolares OFF responden ante disminuciones de luz. Así, el sistema puede detectar con rapidez objetos más claros u oscuros que el fondo.
Las células ganglionares, que constituyen la salida de la retina, suelen poseer campos receptivos con organización centro-periferia. En una célula ON-centro, la iluminación del centro aumenta la descarga, mientras que la luz en la periferia la antagoniza. Las células OFF-centro presentan el patrón inverso. Este diseño hace que los bordes y los contrastes produzcan respuestas más marcadas que una iluminación uniforme.
En los primates, parte de la información se distribuye por canales parcialmente segregados. El canal parvocelular, originado principalmente en células midget, se relaciona con detalle fino, altas frecuencias espaciales y oposición rojo-verde. El canal magnocelular, asociado con células parasol, responde con rapidez y resulta especialmente relevante para contraste y movimiento. El sistema koniocelular participa, entre otras funciones, en señales asociadas con los conos S y la oposición azul-amarillo.
El color, por tanto, no viaja desde el exterior como una propiedad fija. Surge de comparaciones neuronales entre la actividad de distintos conos y de transformaciones posteriores en retina, núcleo geniculado lateral y corteza visual. La percepción cromática depende del contexto, la iluminación y la actividad coordinada de múltiples circuitos.
La ruta hacia la corteza visual
Las células ganglionares convierten la información procesada por la retina en trenes de potenciales de acción. Sus axones se reúnen en la papila óptica para formar el nervio óptico, una prolongación del sistema nervioso central. Desde allí comienza la vía retino-genículo-estriada, la principal ruta relacionada con la percepción visual consciente.
En el quiasma óptico, las fibras procedentes de las hemirretinas nasales cruzan hacia el lado opuesto, mientras que las fibras temporales permanecen en el mismo lado. Después del cruce, cada tracto óptico contiene información proveniente del hemicampo visual contralateral de ambos ojos. Esta disposición permite que el cerebro organice la información del espacio visual de manera ordenada.
Gran parte de estas señales alcanza el núcleo geniculado lateral, un relevo talámico que no actúa como una simple estación de paso. Esta estructura conserva mapas espaciales, integra señales provenientes de la retina con retroalimentación cortical y regula la transferencia de información según el estado general y la atención. Desde ahí, las radiaciones ópticas conducen la señal hacia la corteza occipital. Una porción temporal de estas fibras, conocida como asa de Meyer, transporta información correspondiente al cuadrante visual superior contralateral.
La conservación espacial de las relaciones entre puntos del campo visual recibe el nombre de retinotopía. Zonas vecinas en la retina activan regiones vecinas en el núcleo geniculado lateral y en la corteza visual. Sin embargo, este mapa no tiene una escala uniforme: la fóvea posee una representación cortical desproporcionadamente grande debido a la importancia que tiene para la visión detallada.
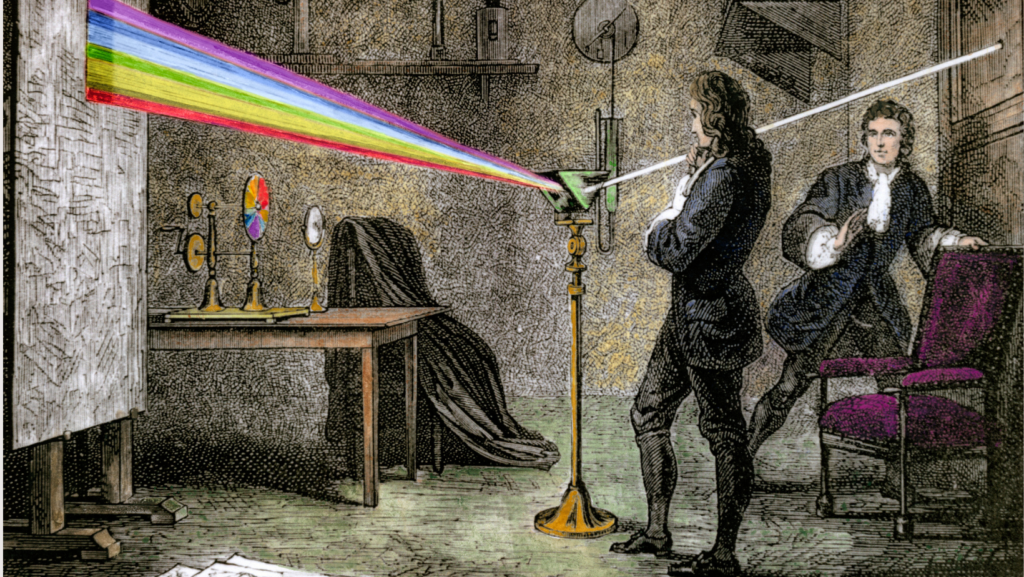
Imagen. Representación clásica del experimento realizado por Sir. Isaac Newton que demuestra que la luz visible está compuesta por diversas longitudes de onda, a lo que llamó spectrum del latín “aparición”
El cerebro no observa una fotografía
Al llegar a la corteza visual primaria, conocida como V1, la información continúa transformándose. En esta región se analizan características como orientación, bordes, contraste, frecuencia espacial y disparidad binocular. Posteriormente, otras áreas visuales integran contornos, texturas, figura-fondo, color, forma y movimiento. V4 participa especialmente en el procesamiento de color y forma, mientras que MT/V5 tiene un papel destacado en el análisis del movimiento.
De manera general, el procesamiento cortical se ha descrito mediante dos grandes corrientes. La corriente ventral occipitotemporal contribuye al reconocimiento de objetos, rostros, palabras y categorías. La corriente dorsal occipitoparietal participa en localización, atención espacial y control visual de la acción. Aunque esta división resulta útil, no representa una separación absoluta: ambos sistemas intercambian información y colaboran con redes de memoria, atención y movimiento.
Para interpretar una escena tridimensional, el cerebro integra diversas pistas. La disparidad binocular, la convergencia ocular, la perspectiva, la oclusión, el tamaño relativo, los gradientes de textura, las sombras y el paralaje de movimiento ayudan a
estimar la profundidad. Esto revela que la imagen bidimensional formada en la retina no basta para especificar el mundo exterior: el sistema nervioso debe calcular relaciones espaciales a partir de información incompleta y distribuida.
Reconocer un objeto tampoco depende solo de sus bordes o colores. Una combinación de características visuales se convierte en un rostro, una palabra o un objeto conocido cuando se relaciona con redes de memoria y conocimiento previamente adquiridas. Algunos modelos proponen que las regiones superiores del cerebro envían expectativas hacia regiones inferiores, mientras estas últimas comunican las discrepancias entre la predicción y la información recibida. Este enfoque de codificación predictiva ha sido influyente, aunque su formulación canónica continúa en debate.
Alteración en el sentido
Debido a la organización anatómica de la vía visual, una lesión puede producir patrones que ayudan a localizar el sitio afectado. El daño anterior al quiasma puede ocasionar pérdida monocular o escotomas. Las lesiones quiasmáticas suelen generar hemianopsia bitemporal, mientras que el daño retroquiasmático puede producir hemianopsias homónimas o cuadrantanopsias. Por ello, el estudio del campo visual constituye una herramienta clínica valiosa.
La ceguera cortical aparece cuando existe daño bilateral en la corteza estriada y se pierde la visión sin que haya una causa oftalmológica suficiente que explique el grado de alteración. Los reflejos pupilares pueden conservarse, porque no toda la información luminosa depende de la corteza visual. Esta condición puede relacionarse con eventos vasculares de la circulación posterior, hipoxia, traumatismos o trastornos metabólicos.
También existen trastornos en los que la persona conserva parte de la información visual elemental, pero pierde capacidades específicas para interpretarla. La agnosia visual es la dificultad para reconocer estímulos mediante la vista sin que se explique por baja agudeza visual, pérdida de campo, alteración general del lenguaje o deterioro cognitivo global. La prosopagnosia afecta el reconocimiento de rostros; la acromatopsia cerebral altera la experiencia consciente del color; y la acinetopsia compromete la percepción del movimiento.
El síndrome de Bálint combina simultanagnosia, ataxia óptica y apraxia ocular. En estos casos, una persona puede conservar aspectos elementales de la visión y, aun así, tener dificultades para organizar una escena compleja o guiar correctamente la acción con ayuda de la información visual. La negligencia espacial, por otro lado, no constituye una pérdida sensorial primaria; se relaciona con una falla atencional para explorar o responder al espacio contralesional, con frecuencia después de lesiones del hemisferio derecho.
Algunas enfermedades neurológicas también pueden alterar la vía visual. La neuritis óptica suele causar pérdida visual subaguda, dolor al mover el ojo y alteración de la visión
cromática; puede asociarse con esclerosis múltiple, trastorno del espectro de neuromielitis óptica y enfermedad relacionada con anticuerpos contra MOG. En la esclerosis múltiple, el sistema visual permite evaluar desmielinización y neurodegeneración mediante estudios como potenciales evocados, resonancia magnética y tomografía de coherencia óptica.
La migraña con aura puede provocar escotomas centelleantes, líneas en zigzag y cambios visuales transitorios, relacionados sobre todo con depresión cortical propagada en la corteza occipital. La epilepsia occipital también puede generar fenómenos visuales, aunque generalmente aparecen de forma más brusca, duran menos y siguen patrones estereotipados.
Una intrincada unión: el ojo y el cerebro
Las alteraciones oculares no deben confundirse con el daño de las vías visuales centrales, aunque ambas pueden afectar la experiencia de ver. El glaucoma compromete las células ganglionares y el nervio óptico, produciendo una neuropatía progresiva con pérdida periférica frecuente en etapas iniciales. La degeneración macular asociada con la edad afecta la mácula y puede alterar la visión central, la lectura y el reconocimiento facial. Las cataratas disminuyen la transparencia del cristalino, mientras que los errores refractivos producen desenfoque al impedir que la imagen se focalice correctamente sobre la retina.
Estas diferencias subrayan que la visión puede fallar en múltiples niveles: en la entrada de luz, en el enfoque óptico, en la conversión de fotones en señales eléctricas, en la conducción nerviosa o en la interpretación cerebral de lo que se observa. El síntoma visual, por sí solo, puede tener orígenes muy distintos.
La complejidad de una red que construye la visión
La visión humana es el resultado de una colaboración extraordinaria entre óptica, bioquímica, neurofisiología y cognición. La retina no se limita a registrar una imagen; analiza diferencias de luminosidad, color, contornos y movimiento antes de enviar información al cerebro. El tálamo regula parte de ese flujo, la corteza extrae e integra características, y las redes distribuidas de atención y memoria convierten patrones nerviosos en objetos, lugares, rostros y acciones con significado.
Por esta razón, ver significa mucho más que mantener los ojos abiertos. Implica que una extensa red neurobiológica conserve su organización, comunicación y capacidad de adaptación. Comprender cada uno de sus componentes permite valorar la complejidad de un sentido que utilizamos todos los días y que, en cuestión de milisegundos, transforma fotones del entorno en la experiencia consciente del mundo que nos rodea.
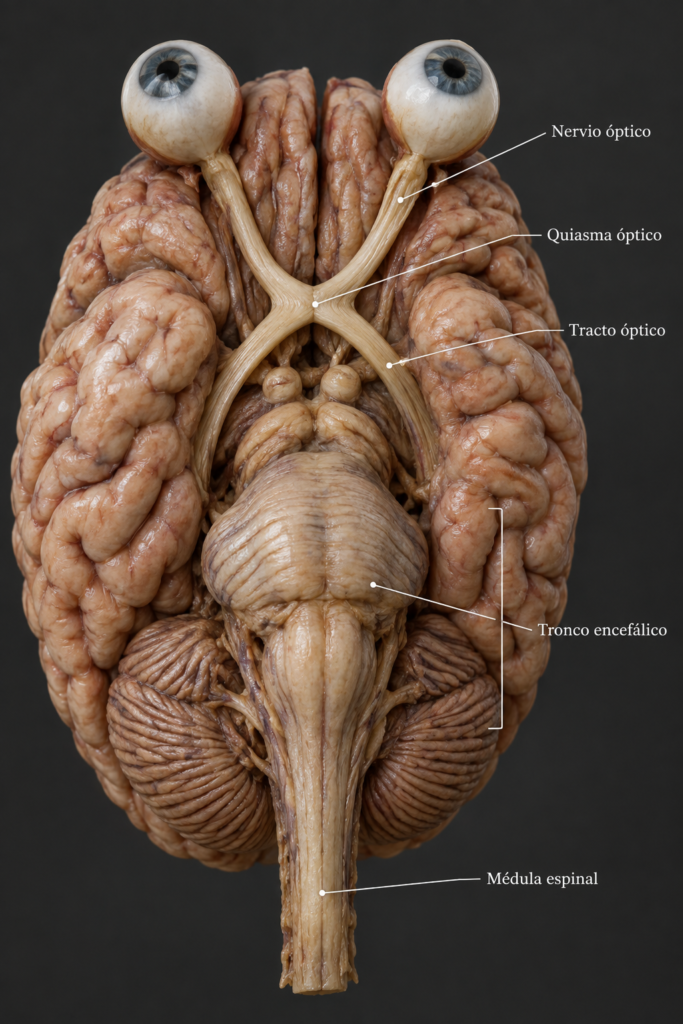
Imagen. Ilustración realista de la vista basal del encéfalo y la conexión con la vía visual así como sus componentes